Inside
Journey 06|複数の人類が生きていた
人類の歴史は、古い人類が順番に私たちへ変わってきた一本道ではありません。同じ土地を歩いた異なる人類、DNAから初めて見つかったデニソワ人、島で独自の歴史を歩んだ人類、そして再び交わった枝。複数の人類が同じ地球を生きていた時代をたどります。
前のJourneyでは、人間の子どもが長い時間をかけて育ち、その時間を一人だけではなく、複数の人が支えられることを見てきました。
子どもは、誰かがすでに試し、覚え、残してきた行動や道具の中へ生まれます。人間の暮らしには、前の世代から次の世代へ経験を渡していく時間がありました。
ただ、そうして子どもを育て、食物を得て、道具を使い、仲間と暮らしていた「人類」は、私たちホモ・サピエンスだけではありません。
現在、地球で生きている人類はホモ・サピエンスだけです。
そのため、過去を振り返ると、古い人類が少しずつ私たちへ近づき、最後にホモ・サピエンスが完成したように見えることがあります。
ただ、実際の人類史はそのような一本道ではありません。
ある枝は長く続き、ある枝は小さな島で独自の身体を持つようになり、ある枝は化石ではなくDNAから初めて存在が知られました。離れた枝が再び出会い、子どもを残したこともあります。
私たちは、人類進化という階段の一番上に立っているのでしょうか。
それとも、いまは一本だけになった、多くの枝のうちの一つなのでしょうか。
人類の歴史は、順番に交代する一本道ではなかった
進化は、古い種類が新しい種類へ一列に置き換わっていく仕組みではありません。
一つの集団が広い地域へ分かれれば、それぞれが違う環境の中で暮らします。長い時間の中で身体や遺伝的な特徴に違いが生まれ、その一部が別の系統として続くことがあります。
その一方で、すべての枝が同じ長さだけ続くわけではありません。人口が減り、ある地域から姿を消す集団もあります。別の場所へ移る集団もあります。一度離れた集団が、気候や環境の変化によって再び出会うこともあります。
人類も同じでした。
ホモ・サピエンスが現れるよりはるか前から、複数の人類系統が存在していました。しかも、一つの人類が完全に消えてから次が現れたわけではありません。
それを強く実感させる証拠が、骨ではなく、地面に残っています。
EVIDENCE|同じ地面に、異なる人類の足跡が残っている
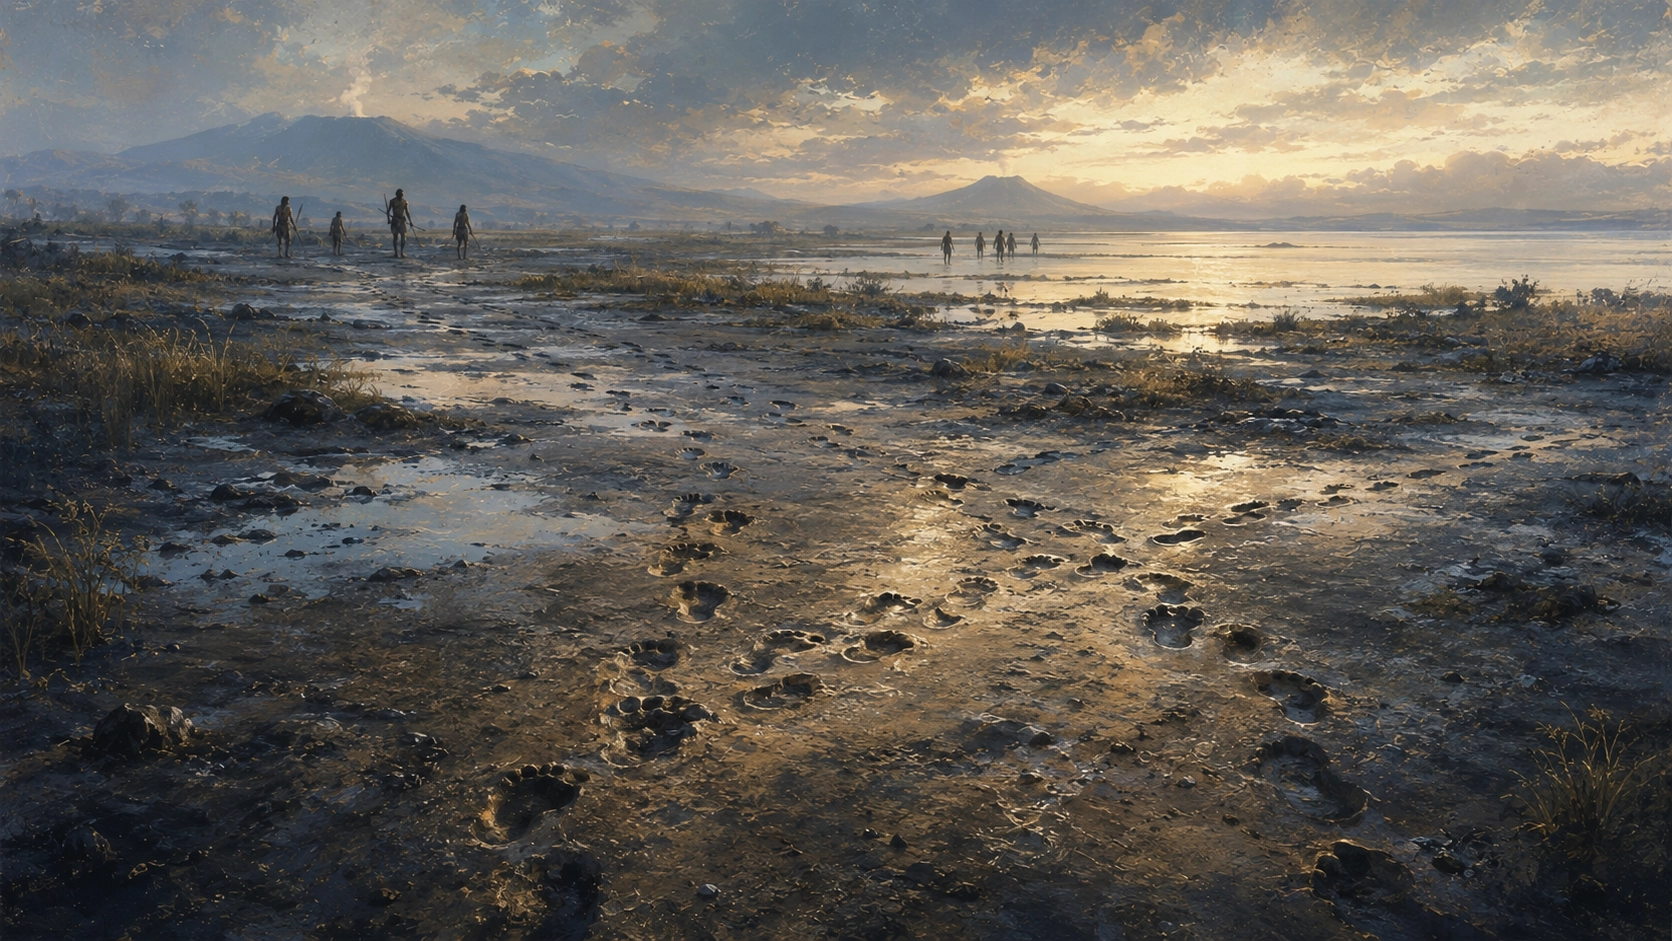
ケニア北部のコービ・フォラには、およそ150万年前の湖岸の地面が残されています。
2024年、その地面から、異なる歩き方と足の形を示す二種類の人類の足跡が同じ面に残っていることが報告されました。研究チームは、一方はホモ・エレクトス、もう一方はパラントロプス・ボイセイが残した可能性が高いと考えています。[1]
足跡だけから歩いた人物の種を完全に確定できるわけではありません。
それでも、同じ湖岸を、異なる身体と歩き方を持つ人類がごく近い時間に利用していたことを示す証拠として、この発見には大きな意味があります。
化石の骨だけを見ると、一つの人物と別の人物のあいだに何千年、何万年という時間が挟まっていることがあります。
足跡には、もっと短い時間が残ります。
ある人類が泥の上を歩き、その足跡が残るほど近い時間に、異なる歩き方をする人類も同じ場所を通った。
150万年前の東アフリカには、「人類」という一種類の存在がいたのではありません。
複数の人類が、同じ土地を生活の場所として使っていたのです。
EVIDENCE|同じ時代の地球に、いくつもの人類がいた
時代をずっと先へ進めても、この状況は続きます。
インドネシアのジャワ島では、ホモ・エレクトスが非常に長い歴史を持っていました。現在知られている比較的新しい化石群の年代は、およそ11万7千〜10万8千年前と推定されています。[2]
そのころ、アフリカではホモ・サピエンスの系統がすでに長く存在していました。
さらに時代を進め、およそ5万〜7万年前の地球を見てみます。
ヨーロッパや西アジアにはネアンデルタール人がいました。アジアにはデニソワ人につながる集団が存在していました。
インドネシアのフローレス島では、小柄な身体を持つホモ・フローレシエンシスの骨が、およそ10万〜6万年前の地層から見つかっています。石器を含む関連する地層は、さらに広い年代にわたります。[3]
フィリピンのルソン島では、約6万7千年前の足の骨と、そのほかの歯や手足の骨から、ホモ・ルゾネンシスという人類が提案されました。[4]
これらの年代は、それぞれの集団が初めて生まれた日や、最後の一人が亡くなった日ではありません。現在までに発見された証拠が示す範囲です。
また、遠く離れた人類同士が実際に出会ったと断定できるわけでもありません。
それでも、地球の各地に異なる人類が同時に存在していた時代があったことは明らかです。
草原にも、寒冷なユーラシアにも、高地にも、海に隔てられた島にも、それぞれの人類が暮らしていました。
名前より先に、DNAから見つかった人類がいる
複数の人類がいたことを知る方法も、化石の形だけではなくなりました。
その転換を象徴するのが、デニソワ人です。
シベリアのデニソワ洞窟から見つかった小さな指の骨は、それだけを見ても、未知の人類のものだとは分かりませんでした。
ところが、骨に残ったDNAを解析すると、ホモ・サピエンスともネアンデルタール人とも異なる人類集団の存在が見えてきました。2010年、そのゲノム研究によって、現在デニソワ人と呼ばれている系統が明らかになりました。[5]
つまり、最初に全身の骨格を見つけ、その姿から新しい人類だと判断したのではありません。
小さな骨に残っていた分子が、それまで知られていなかった人類の枝を先に見せたのです。
その後、チベット高原の白石崖溶洞に由来する下顎骨が、古代タンパク質の分析によってデニソワ人へ結びつけられました。少なくとも約16万年前のものです。[6]
デニソワ人は、シベリアの一つの洞窟だけにいた集団ではありませんでした。
そして2025年、彼らについての姿はさらに大きく変わります。
EVIDENCE|分子の証拠は、古い分類を書き換えている
中国東北部で見つかったハルビン頭骨は、ほぼ完全な頭骨が残る重要な化石です。
2021年、この頭骨は形態の特徴から「ホモ・ロンギ」という新しい種として提案されました。
ところが2025年、別の種類の証拠が加わりました。
頭骨から得られた古代タンパク質を解析した研究では、ハルビンの人物がデニソワ人系統へ位置づけられることを支持する結果が得られました。[7]
さらに、歯に付着していた歯石からミトコンドリアDNAが回収され、その配列もデニソワ人の変異の中へ位置づけられました。頭骨は少なくとも約14万6千年以上前のものとされています。[8]
同じ2025年には、台湾沖から見つかった澎湖1号という下顎骨も、古代タンパク質によって男性のデニソワ人へ結びつけられました。[9]
ここで起きているのは、単に人類の名前が増えていることではありません。
骨の形から見えていた歴史へ、DNAやタンパク質という別の証拠が重なり始めています。
以前つけられた名前が、新しい証拠によって別の系統へ結び直されることがあります。逆に、形のよく似た化石が、分子の証拠によって異なる集団だったと分かる可能性もあります。
人類の系統図は、一度完成した図ではありません。
証拠が増えるたびに、枝の位置そのものが描き直されています。
OPEN QUESTION|人類は、いったい何種類いたのか
では、地球には何種類の人類がいたのでしょう。
この問いに、一つの確定した数字を置くことはできません。
理由の一つは、まだ見つかっていない化石があるからです。しかし、それだけではありません。
そもそも、「どこからを別の種として数えるのか」という問題があります。
化石では、頭骨や歯、顎、手足などに見られる形の組み合わせを比較し、別の種が提案されます。
ただ、同じ集団の中にも個体差があります。年齢や身体的な性差、暮らした地域や時代によっても骨の特徴には違いが生まれます。
しかも、残るのは身体のごく一部だけということも珍しくありません。
現在生きている生物なら、身体、行動、繁殖、DNAなどを合わせて分類できます。絶滅した人類では、そのすべてを確認することはほとんどできません。
デニソワ人のように、遺伝的にははっきりした集団として扱われていても、統一された正式な種名の扱いについて議論が残る場合もあります。
人類史の枝は、教科書に載った種名の数と完全に一致するわけではないのです。
EVIDENCE|分かれた枝は、再び交わった
さらに、人類の枝は、一度分かれたら二度と交わらなかったわけでもありません。
デニソワ洞窟から見つかった一つの小さな骨片は、そのことを驚くほど直接的に示しています。
骨に残ったゲノムを解析すると、その人物の母親はネアンデルタール人、父親はデニソワ人でした。遠い祖先に別の人類がいたという話ではありません。両親が異なる人類集団に属する第一世代の子どもでした。[10]
研究者が調べた古人類の骨は、過去に生きた人々のごくわずかな一部です。その中から第一世代の子どもが見つかったことは、ネアンデルタール人とデニソワ人が出会ったとき、交配が極端に珍しい出来事ではなかった可能性を示しています。
ただし、二つの集団が完全に一つへ溶け合ったわけでもありません。
長い時間にわたって遺伝的な違いを保ちながら、出会った場所では遺伝子が行き来することがあった。
人類の歴史は、完全に離れた枝だけでできているわけでも、すべてが一つに混ざり続けたわけでもありません。
分かれ、離れ、再び出会う。その繰り返しがありました。
HYPOTHESIS|さらに古い枝も、交わっていたのか
その関係は、ネアンデルタール人とデニソワ人より、さらに古い人類までさかのぼる可能性があります。
2026年、中国の周口店、和県、孫家洞から見つかった約40万年前のホモ・エレクトス6個体の歯から、古代のエナメル質タンパク質が解析されました。[11]
その中には、後のデニソワ人にも見られるアミノ酸変異が含まれていました。
研究チームは、デニソワ人のゲノムに以前から知られていた、より古い「超古代型」の人類由来と考えられるDNAの一部について、東アジアのホモ・エレクトスに近い集団が供給源だった可能性を示しています。
これは、「このホモ・エレクトス個体とこのデニソワ人個体の間に子どもが生まれた」と直接確認した証拠ではありません。
一つのタンパク質変異とゲノムのパターンから、過去の遺伝子流動を推定したものです。さらに多くの化石と分子資料が必要です。
それでも、人類の枝同士の関係が、これまで考えられていた以上に古く、複雑だった可能性が見えてきました。
人類進化を一本の木として描く場合でさえ、その枝はきれいに離れて伸びるだけではないのかもしれません。
最後まで残ったことは、最も優れていたことではない
現在、地球に残っている人類はホモ・サピエンスだけです。
この結果だけを見ると、私たちがほかの人類より優れていたから最後まで残った、と考えたくなるかもしれません。
ただ、生き残ったことと、あらゆる能力で優れていたことは同じではありません。
ホモ・エレクトスは、アフリカからユーラシア、東南アジアへ広がり、地域によっては100万年以上にわたる長い歴史を持ちました。
ネアンデルタール人は、寒冷な時期を含むユーラシアで長い時間を暮らしました。
デニソワ人は、シベリアからチベット高原、東アジアの温暖な地域まで、これまで想像されていた以上に広い環境へ分布していたことが分かり始めています。
フローレス島やルソン島では、海に隔てられた環境の中で、それぞれ独自の身体的特徴を持つ人類が暮らしました。
彼らは、ホモ・サピエンスになる途中で失敗した存在ではありません。
それぞれが、その時代、その場所の中で世代を重ねていた人類です。
集団が続くかどうかには、人口の大きさ、気候、利用できる資源、移動できる範囲、地域的な孤立、ほかの集団との接触、病原体、偶然など、多くの条件が関わります。
現在まで残ったという結果を、そのまま知能や価値の順位へ変えることはできません。
私たちは、一本の階段の頂上にいるのではない
現在の世界だけを見れば、人類は一種類です。
過去の地球は違いました。
同じ湖岸を別の人類が歩き、遠く離れた島には別の身体を持つ人類が暮らし、寒冷なユーラシアにはネアンデルタール人がいました。
小さな指の骨のDNAから、それまで誰も名前を知らなかった人類が現れました。
一度別の種として提案された頭骨が、新しいタンパク質とDNAの証拠によってデニソワ人の歴史へ結び直されました。
そして、分かれた人類のあいだには子どもも生まれていました。
人類の歴史は、私たちへ向かって一段ずつ上がる階段ではありません。
何度も枝分かれし、長く続いた枝があり、途絶えた枝があり、ときには離れた枝同士が再び触れ合いました。
私たちは、その歴史の外側にいる完成形ではありません。
いままで続いている、一つの枝です。
そして、かつて同じ地球を生きた人類の中で、私たちと特に長い時間と場所を重ねた集団がいました。
ネアンデルタール人です。
ホモ・サピエンスとネアンデルタール人は、ただ同じ時代に存在しただけではありません。分布が重なり、出会い、子どもを残しました。その痕跡は、現在生きている私たちのゲノムにも残っています。
では、二つの人類はどこで出会い、どのような関係を持ったのでしょう。
そして、なぜ現在、ネアンデルタール人という集団は地球にいないのでしょう。
次のJourneyでは、「私たちが勝ち、彼らが負けた」という物語から離れ、ホモ・サピエンスとネアンデルタール人が同じ地球を生きた時間をたどります。
この旅をさらに深く読む
出典・参考文献
-
Hatala, K. G., Roach, N. T., Behrensmeyer, A. K. et al.(2024)
Footprint evidence for locomotor diversity and shared habitats among early Pleistocene hominins.
Science, 386, 1004–1010. -
Rizal, Y., Westaway, K. E., Zaim, Y. et al.(2020)
Last appearance of Homo erectus at Ngandong, Java, 117,000–108,000 years ago.
Nature, 577, 381–385. -
Sutikna, T., Tocheri, M. W., Morwood, M. J. et al.(2016)
Revised stratigraphy and chronology for Homo floresiensis at Liang Bua in Indonesia.
Nature, 532, 366–369. -
Détroit, F., Mijares, A. S., Corny, J. et al.(2019)
A new species of Homo from the Late Pleistocene of the Philippines.
Nature, 568, 181–186. -
Reich, D., Green, R. E., Kircher, M. et al.(2010)
Genetic history of an archaic hominin group from Denisova Cave in Siberia.
Nature, 468, 1053–1060. -
Chen, F., Welker, F., Shen, C.-C. et al.(2019)
A late Middle Pleistocene Denisovan mandible from the Tibetan Plateau.
Nature, 569, 409–412. -
Fu, Q., Bai, F., Rao, H. et al.(2025)
The proteome of the late Middle Pleistocene Harbin individual.
Science, 389, 704–707. -
Fu, Q., Cao, P., Dai, Q. et al.(2025)
Denisovan mitochondrial DNA from dental calculus of the >146,000-year-old Harbin cranium.
Cell, 188, 3919–3926.e9. -
Tsutaya, T., Sawafuji, R., Taurozzi, A. J. et al.(2025)
A male Denisovan mandible from Pleistocene Taiwan.
Science, 388, 176–180. -
Slon, V., Mafessoni, F., Vernot, B. et al.(2018)
The genome of the offspring of a Neanderthal mother and a Denisovan father.
Nature, 561, 113–116. -
Fu, Q., Wu, Z., Bennett, E. A. et al.(2026)
Enamel proteins from six Homo erectus specimens across China.
Nature, 655, 141–147.